#1. 뇌의 영역을 나누기 전에, 세포의 출발점을 묻는다
뇌의 앞부분과 뒷부분을 만드는 세포는, 겉으로 뇌가 구분되기 전부터 서로 다른 발생 경로에 들어설 수 있다. 2026년 9월 18일 Nature Neuroscience에 발표된 연구는 생쥐의 세포 계통 추적과 인간 다능성 줄기세포의 분화를 연결해 이 주장을 시험했다. 앞쪽 신경외배엽(anterior neural ectoderm, aNE)은 전뇌·중뇌로, 뒤쪽 신경외배엽(posterior neural ectoderm, pNE)은 후뇌로 이어지는 두 전구세포 집단이다. 연구의 질문은 완성된 뇌를 몇 조각으로 나눌 것인가보다, 그 조각들을 만드는 세포의 선택지가 언제 좁아지는가에 있다.[1]
이 질문을 이해하려면 완성품의 모습과 제작 경로를 구분하면 된다. 서로 이어진 구조물도 서로 다른 재료와 공정에서 만들어질 수 있다. 반대로 두 곳에 떨어져 보이는 세포도 같은 조상 세포의 후손일 수 있다. 따라서 발생 중인 뇌에서 두 영역을 발견했다는 관찰과, 그 영역을 만드는 세포의 출발 경로가 달랐다는 주장은 서로 다른 실험을 요구한다.
논문은 형태, 유전자 발현, 계통 추적, 분화 조건을 바꾸는 실험을 조합한다. 각각의 실험이 어느 질문에 답하는지 따라가면, “뇌는 두 개다”라는 짧은 표현보다 훨씬 구체적인 결과가 보인다. 핵심은 두 개의 독립적인 성인 뇌를 발견했다는 이야기가 아니라, 하나의 뇌를 만드는 과정에 일찍 제한되는 두 발생 경로가 있다는 모델이다. 여기서 두 경로도 더 이른 다능성 상태에서 출발한다.[1]
논문 발표: 2026-09-18 · 이 글의 기준일: 2026-09-19. 논문 초록, 공개 Figure 1·2와 전체 캡션, 공개 확장 자료 및 데이터 안내를 기준으로 해설한다. 구독이 필요한 본문 전체와 Methods 전체를 열람한 범위는 아니다.#2. 세포의 현재 상태와 미래 운명은 어떻게 다른가
#신경외배엽은 완성된 뉴런의 이름이 아니다
발생학에서 외배엽(ectoderm)은 초기 배아의 조직 계열 중 하나다. 신경외배엽은 그중 신경계로 이어지는 상태를 가리킨다. 전구세포(progenitor)는 이후 특정 세포들을 만들어 낼 수 있는 중간 단계다. 이 연구에서 aNE와 pNE라는 이름을 읽을 때도, 성체의 전뇌 뉴런과 후뇌 뉴런을 즉시 떠올리기보다 앞으로 어느 영역으로 분화할 수 있는 세포인가를 먼저 생각해야 한다.
예를 들어 어떤 세포에서 유전자 A가 많이 발현되었다고 하자. 그 관찰은 지금 그 세포의 분자적 상태를 알려 준다. 하지만 다음 날 다른 신호를 주었을 때 다른 종류로 바뀔 수 있는지까지 알려 주지는 않는다. 이미 운명이 제한된 상태와, 아직 여러 선택지가 남아 있지만 잠시 특정 유전자를 발현하는 상태는 정지 화면만으로 구분하기 어렵다.
이 차이가 논문의 실험 순서를 만든다. 먼저 같은 시점에 다른 상태의 집단이 보이는지 확인한다. 다음에는 그 집단을 표시하고 시간이 지난 뒤 후손이 어디에 나타나는지 본다. 마지막으로 배양 조건을 바꾸거나 두 집단을 함께 배양해, 다른 운명으로 바뀔 여지가 얼마나 남았는지 시험한다. 위치, 후손의 위치, 다른 조건에서의 반응을 따로 읽는 것이다.
#단일세포 지도는 계보를 직접 촬영한 영상이 아니다
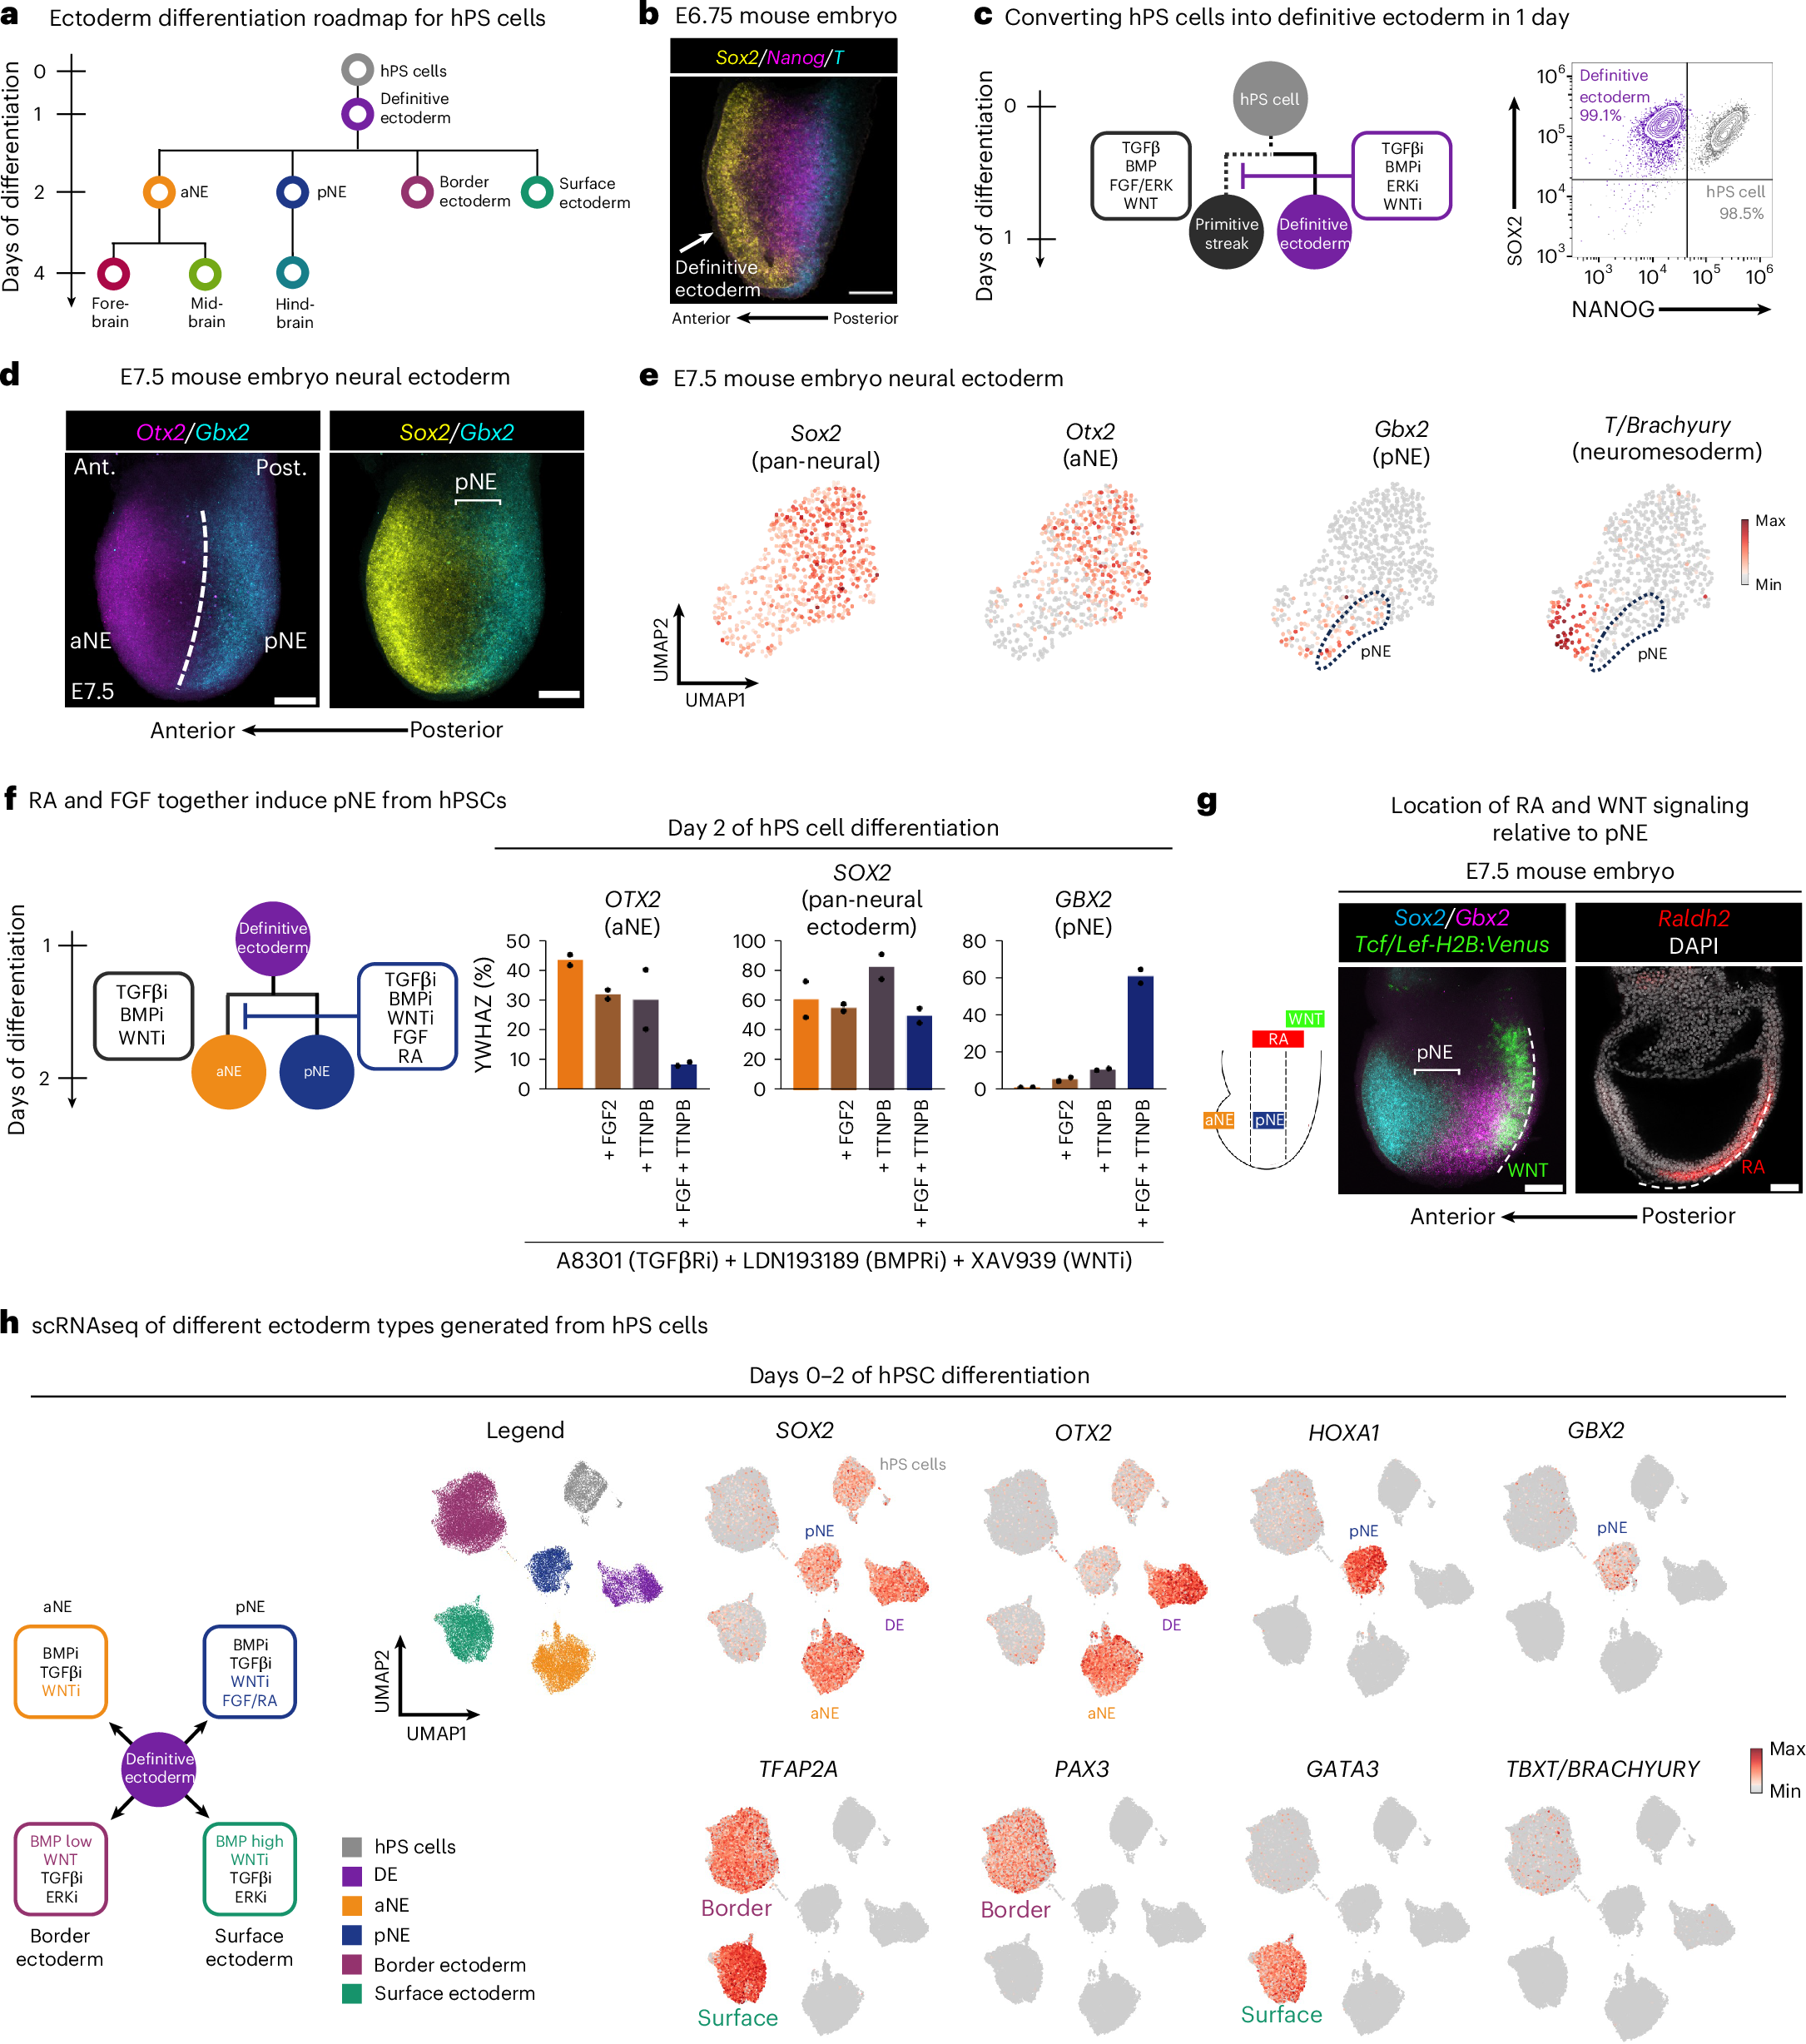
Figure 1의 단일세포 RNA 분석 지도에서는 세포마다 측정한 많은 유전자 발현을 낮은 차원의 평면에 배치한다. 비슷한 발현 패턴을 가진 세포가 모이는 구조를 읽을 수 있다. 그림의 UMAP1·UMAP2는 이 요약 좌표다. 점의 색은 어떤 조건의 세포인지 또는 특정 유전자의 발현 강도를 나타낸다.[2]
지도를 읽을 때는 질문을 두 개로 나누면 좋다. 첫 질문은 “서로 구별되는 상태가 존재하는가?”이고, 두 번째는 “한 상태에서 다른 상태로 실제 후손이 이동했는가?”다. RNA 지도는 첫 질문에 유용하다. 두 번째 질문에는 시간과 계통 정보가 추가되어야 한다. 이 구분 때문에 연구진은 지도만 제시하는 대신 Figure 2의 추적·분화 실험을 이어 붙였다.
#3. Figure 1에서 두 경로가 드러나는 순서
#패널 a: 공통 출발점 다음에 경로가 갈라진다
맨 위 a는 인간 다능성 줄기세포(human pluripotent stem cells, hPS cells)의 분화 도식이다. 회색의 다능성 세포에서 보라색 definitive ectoderm을 거쳐, 주황색 aNE와 파란색 pNE 등으로 갈라진다. aNE의 아래에는 전뇌와 중뇌, pNE의 아래에는 후뇌가 연결되어 있다. 옆의 날짜 축은 배양 분화의 진행을 표시한다.[2]
따라서 이 도식의 논점은 모든 세포의 공통 조상이 없다는 것이 아니다. 어느 중간 단계까지를 “모든 뇌 영역을 만들 수 있는 공통 신경 전구세포”로 볼 수 있는가가 바뀐다. 공통 출발점이 있다는 사실과, 그 이후 일찍 선택지가 제한된다는 사실은 함께 성립한다. 발생 경로의 분기점이 앞당겨졌다는 의미로 읽으면 불필요한 모순이 사라진다.
#패널 d·e: 조직의 위치와 분자적 상태를 맞춰 본다
d에서는 생쥐 배아의 앞뒤 방향을 따라 Otx2와 Gbx2 발현 영역을 비교한다. Otx2는 앞쪽 집단을, Gbx2는 뒤쪽 집단을 구별하는 표지로 사용된다. Sox2와 함께 보는 이유는 해당 위치가 신경외배엽의 성격을 가지는지 연결하기 위해서다. e는 같은 발생 시기의 공개 단일세포 데이터를 이용해 Sox2, Otx2, Gbx2와 T/Brachyury 발현을 나란히 보여 준다.[2]
각 사진과 지도는 서로 다른 장점을 갖는다. 조직 염색은 배아 안에서 실제로 어디에 있는지를 보여 주고, 단일세포 분석은 개별 세포가 어떤 유전자 조합을 보이는지 비교한다. 두 결과를 연결하면 “뒤쪽에 있는 모든 세포가 같은 종류”라는 단순화를 피할 수 있다. 위치 이름은 출발점이고, 실제 세포 정체성은 표지의 조합과 후속 행동으로 확인해야 한다.
#패널 f·g: 위치를 만드는 신호를 비교한다
f에서는 인간 줄기세포에서 유래한 초기 외배엽에 서로 다른 신호 조건을 주고, aNE·pNE와 연결되는 유전자 발현을 비교한다. RA 계열 신호와 FGF를 함께 준 조건의 반응을 보는 것이 핵심이다. g에서는 배아 속 WNT 신호와 RA 합성 효소가 나타나는 위치를 함께 읽는다. pNE를 배아 뒤쪽의 다른 전구세포와 구별하려는 실험이다.[2]
여기서 “발현이 100%”라는 표기를 그대로 세포 순도로 읽으면 해석이 바뀐다. Figure 1f의 세로축은 기준 유전자 YWHAZ에 대한 상대 발현이다. 100%는 해당 유전자가 기준 유전자와 같은 발현 수준이라는 뜻이다. 반면 유세포분석이나 면역염색에서 표지 양성 세포의 비율을 표시했다면 분모는 검사한 세포 수다. 같은 퍼센트 기호도 유전자 발현량을 비교하는지, 세포를 세는지를 확인해야 한다.[2]
#4. Figure 2는 어떻게 ‘운명 제한’을 시험하는가
#생쥐에서는 먼저 표시하고 나중의 후손을 찾는다
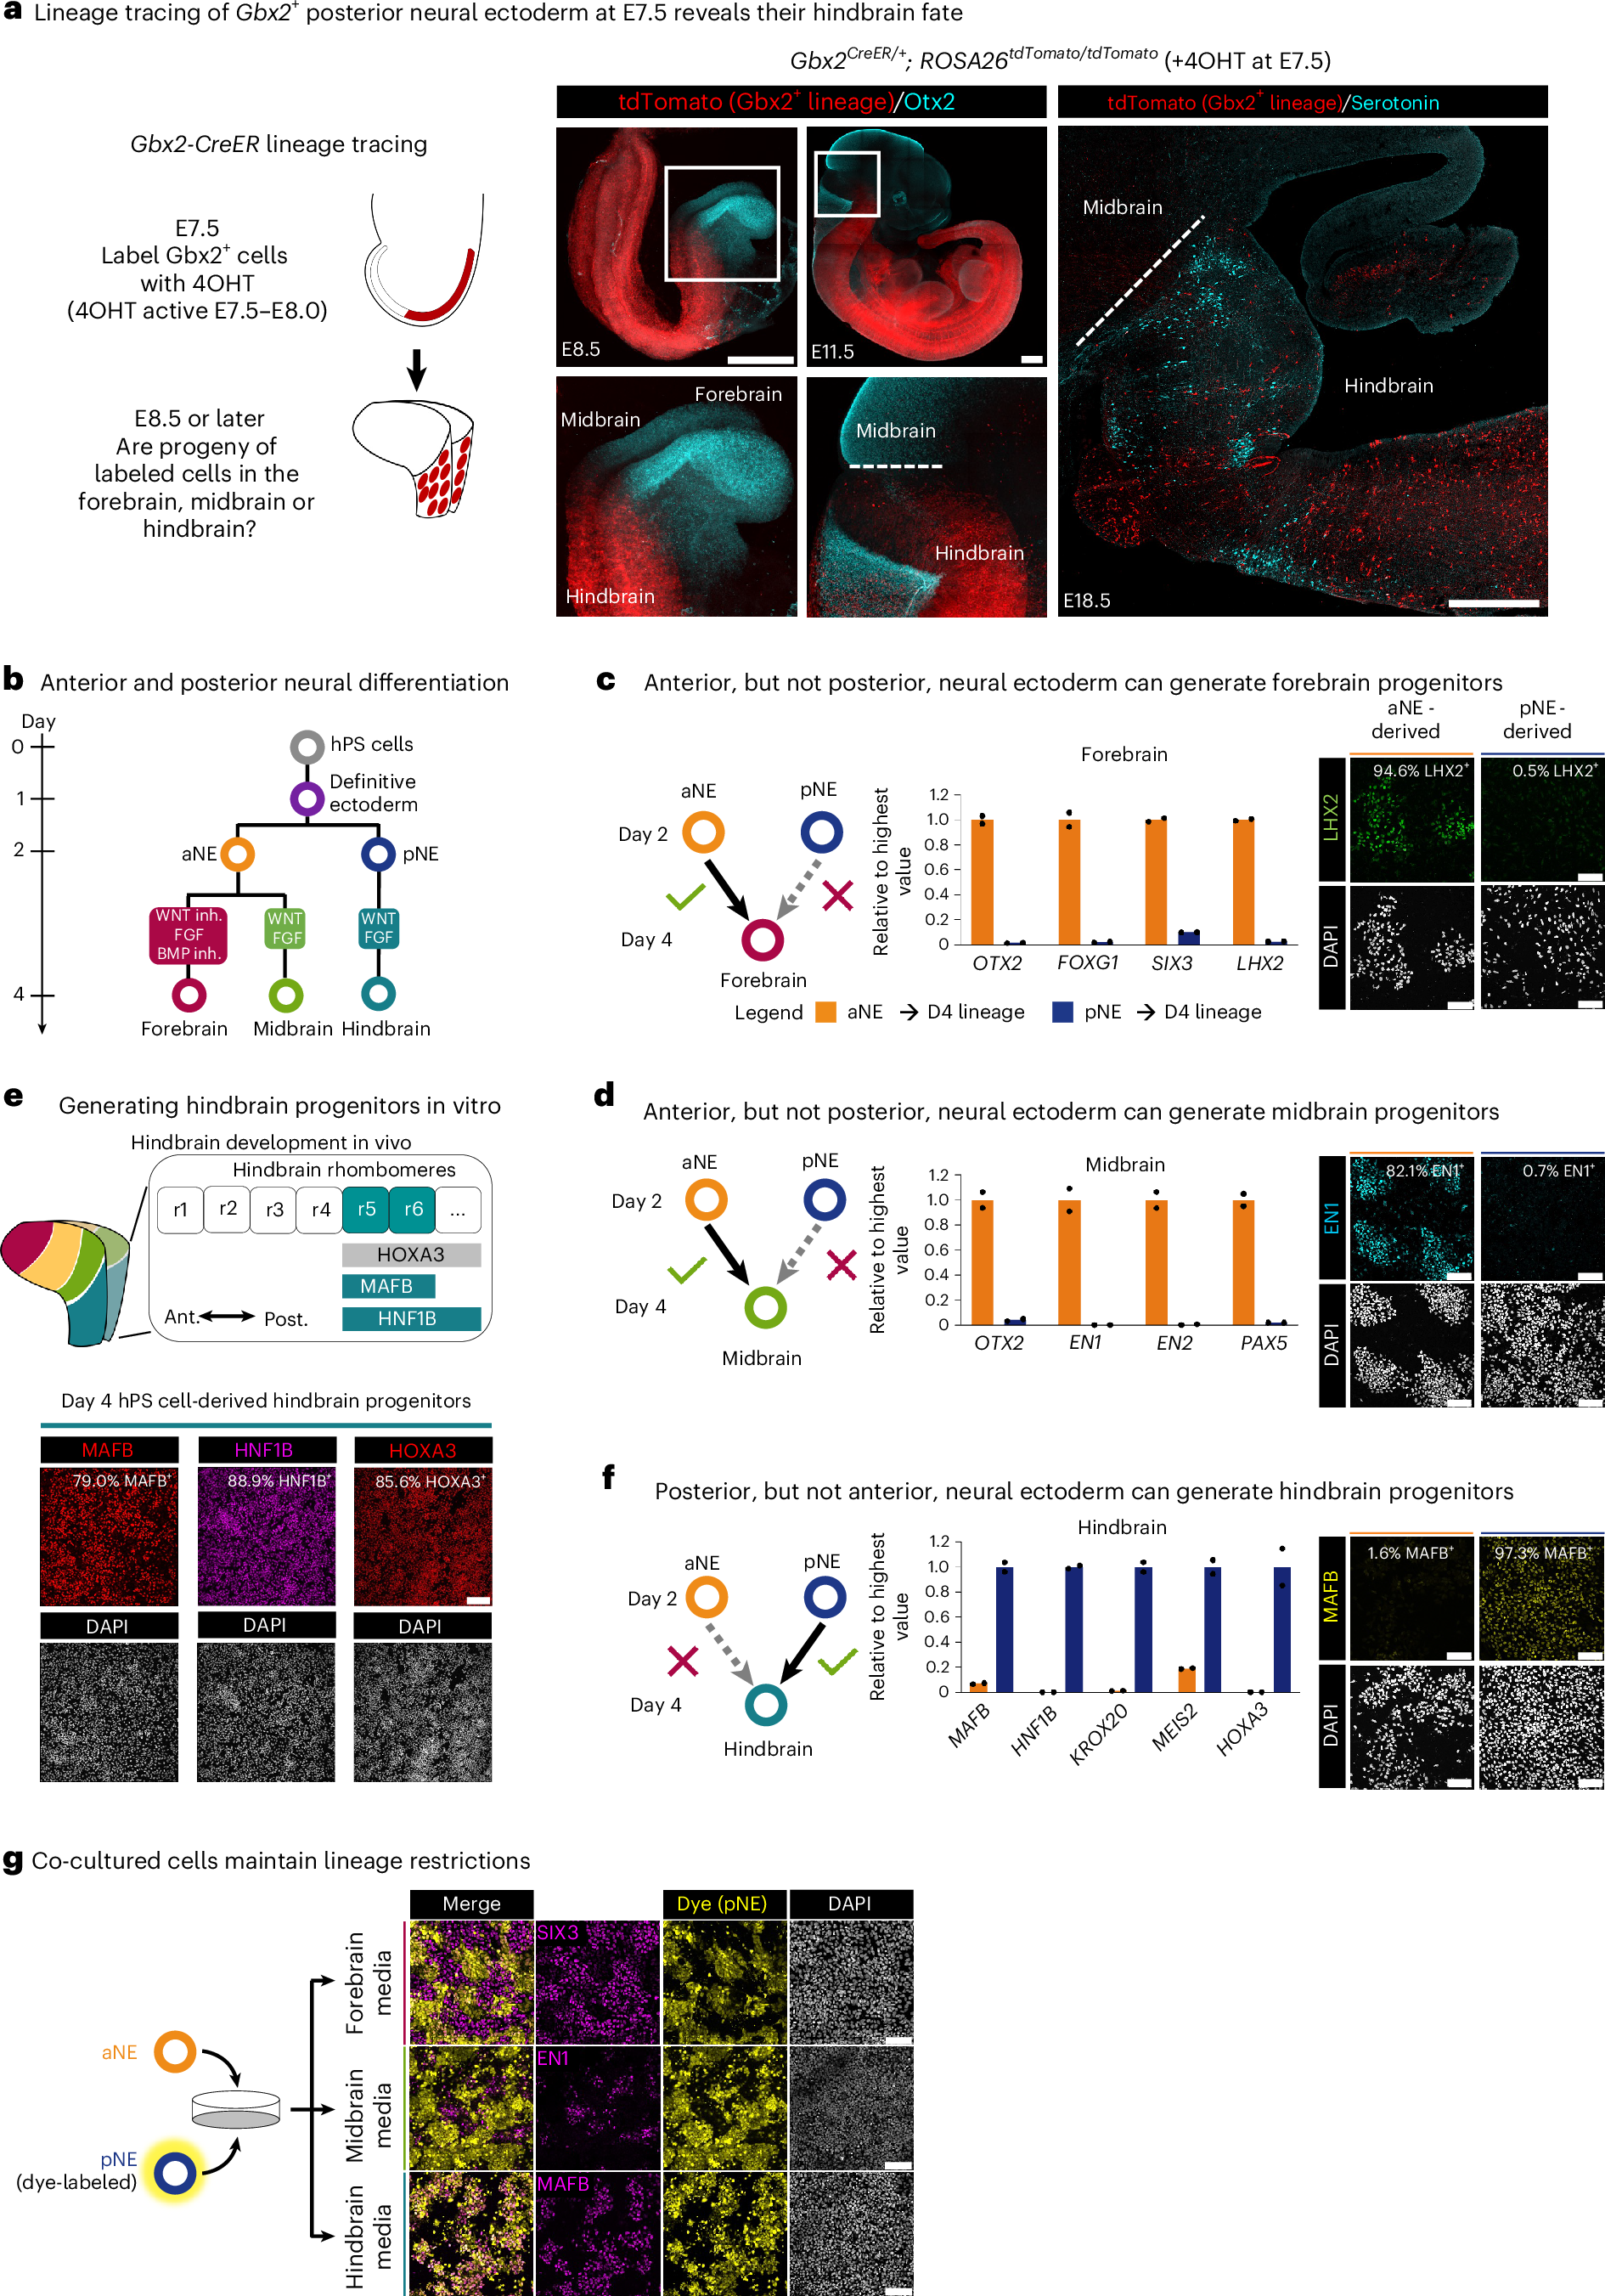
Figure 2a의 출발점은 E7.5 시기의 Gbx2 양성 세포다. 연구진은 유도 가능한 유전적 표지를 이용해 이 세포와 후손을 붉은 tdTomato 신호로 추적했다. 이후 발생 단계의 조직을 살펴, 붉게 표시된 후손이 전뇌·중뇌·후뇌 중 어디에 나타나는지 확인한다. Otx2 또는 세로토닌성 뉴런 표지는 각 단계에서 영역의 경계를 읽는 기준으로 사용된다.[3]
이 방법의 장점은 나중에 Gbx2 발현이 바뀌더라도, 처음 표시한 계통의 후손을 추적한다는 점이다. 현재 켜진 유전자만 촬영하는 실험과 다르게 시간 정보를 갖는다. 그림에서는 초기 뒤쪽 계통의 후손이 이후 후뇌 쪽에 분포하는 패턴을 보여 준다. 표시 시점과 관찰 시점을 구분해서 읽어야, 최종 조직 사진을 초기 세포의 운명에 관한 근거로 연결할 수 있다.[3]
다만 유전적 표지도 선택한 세포 집단과 시간 창을 갖는다. 표지가 얼마나 선택적으로 켜졌는지, 충분한 세포가 표시됐는지, 경계 부근의 세포를 어떻게 분류했는지는 계통 해석의 중요한 조건이다. 이 질문들은 연구를 부정하기 위한 장식이 아니라, 어떤 범위의 후손을 조사했는지 정하는 질문이다. 공개 캡션은 추적 표지와 단계별 표본 수를 제공하지만 모든 Methods 검토를 대신하지는 않는다.
#인간 세포에서는 같은 목적지를 향한 신호를 각각 준다
c와 d는 aNE와 pNE에 각각 전뇌 또는 중뇌를 유도하는 조건을 주고 반응을 비교한다. f는 후뇌 유도 조건을 비교한다. 왼쪽 도식의 초록 체크와 붉은 엑스는 해당 조건에서 어느 출발 집단이 그 운명으로 잘 이어지는지를 요약한다. 가운데 막대는 관련 유전자들의 상대 발현, 오른쪽은 단백질 표지를 염색한 세포 사진이다.[3]
이 설계에서 가장 중요한 비교는 같은 집단 안에서 시간만 흐르는 비교가 아니다. 출발 상태가 다른 두 집단에 같은 도착 신호를 주었을 때, 반응이 같아지는가를 묻는다. 만약 두 집단이 자유롭게 서로 바뀐다면 목적지 신호에 따라 비슷한 결과를 보일 가능성이 있다. 반대로 같은 신호를 주어도 출발 집단에 따라 다른 결과가 유지되면, 앞선 상태가 이후의 선택지를 제한한다는 근거가 된다.
#함께 배양해도 차이가 남는지 확인한다
g에서는 pNE를 형광으로 구별한 뒤 aNE와 섞어 배양한다. 그 후 전뇌·중뇌·후뇌를 유도하는 각각의 환경에서 표지 발현을 관찰한다. 같은 접시의 이웃으로 놓아도 어느 집단에서 원하는 표지가 나오는지 추적할 수 있다. 출발 집단의 차이가 단순히 서로 다른 배양 접시에 있었기 때문인지 검토하는 실험이다.[3]
이 실험을 이해할 때는 “조건을 완전히 동일하게 만들었다”보다 “특정한 환경 차이를 줄이면서 출발 집단을 비교했다”고 읽는 편이 정확하다. 함께 배양하면 같은 배지와 이웃 환경을 공유하지만, 세포의 이전 상태와 내부 조절 구조는 여전히 다를 수 있다. 바로 그 남아 있는 차이가 연구진이 확인하려는 대상이다.
#5. 결과표의 숫자와 표본을 읽는 방법
| 근거 | 실제로 비교한 것 | 독자가 확인할 지점 |
|---|---|---|
| Figure 1의 조직 염색·RNA 지도 | 위치와 유전자 발현 조합 | 공간 분리와 계통 분리를 구별한다. |
| Figure 2a 계통 추적 | 초기 표시 세포의 후손 위치 | 표시 시점·영역·추적 기간을 함께 본다. |
| Figure 2c·d·f 분화 시험 | 두 출발 집단에 같은 유도 신호를 제공 | 상대 발현과 표지 양성률의 분모를 구별한다. |
| Figure 2g 공동 배양 | 두 집단이 공유 환경에서도 차이를 유지하는지 | 어느 집단을 형광으로 추적했는지 확인한다. |
Figure 2의 대표 면역염색 이미지에는 전뇌 표지 LHX2 양성률이 aNE 유래 94.6%, pNE 유래 0.5%로, 중뇌 표지 EN1은 각각 82.1%, 0.7%로 표시돼 있다. 후뇌 표지 MAFB는 반대 방향으로 aNE 유래 1.6%, pNE 유래 97.3%다. 이 숫자는 그림 속 대표 이미지에 적힌 표지 양성률이다. 이를 모든 세포주와 모든 배양 배치의 평균 수율이나 장기 기능 성공률로 바꾸어 소개하지 않는다.[3]
상대 발현 막대의 정규화도 다르다. Figure 2c·d·f의 qPCR 그래프는 각 유전자에서 가장 높은 발현을 보인 시료를 기준으로 표시한다. 막대가 1이라고 해서 그 유전자를 모든 세포가 발현한다는 뜻이 아니다. 유전자끼리 막대 높이가 같다고 해서 절대적인 RNA 분자 수가 같다는 뜻도 아니다. 그림의 색과 축을 읽은 다음 정규화 대상을 확인해야 한다.[3]
독립 반복의 단위도 중요하다. 해당 qPCR 캡션은 한 실험의 생물학적 반복 두 개를 설명하고, 각 반복 안에서 기술적 반복 두 개를 평균했다고 명시한다. 기술적 반복은 같은 생물학적 재료를 여러 번 측정했을 때의 흔들림을 다룬다. 생물학적 반복은 재료 또는 준비 과정의 독립적인 차이를 다룬다. 같은 데이터를 여러 번 읽었다고 생물학적 표본이 그만큼 늘어나는 것은 아니다.[3]
따라서 수천 개 세포가 있는 그림이라도 독립 배양이 몇 번인지 따로 봐야 한다. 세포 수가 많으면 한 시료 내부의 분포를 자세히 볼 수 있지만, 서로 다른 세포주·날짜·실험자에서 결과가 얼마나 유지되는지는 다른 질문이다. 원논문 캡션을 포함해 그림을 읽어야 하는 이유가 여기에 있다.
#6. 염색질 차이와 후뇌 운동뉴런은 무엇을 더하는가
RNA는 현재의 발현 상태를 보여 준다. 염색질 접근성(chromatin accessibility)은 조절 단백질 등이 DNA의 어느 영역에 접근하기 쉬운지와 연결된다. 같은 세포에서 두 정보를 같이 읽으면 지금 실행되는 발현 프로그램과 앞으로 실행될 가능성을 가진 조절 구조를 나누어 생각할 수 있다. 논문은 aNE와 pNE가 서로 다른 접근성 양상을 보이며 이후 영역 정체성과 연결된다고 보고한다.[1]
이 주장의 흥미로운 부분은 운명 제한이 표지 이름의 차이에만 머물지 않는다는 것이다. 이후 조건이 바뀌어도 반응의 범위가 제한되는 이유를 내부 조절 상태와 연결하려는 시도다. 다만 접근성이 높은 영역이 보인다는 관찰과, 특정 조절 요소를 바꾸면 운명이 바뀐다는 인과 실험은 증거의 역할이 다르다. 이 글에서는 공개 초록이 지지하는 염색질 차이까지를 설명하고, 열람하지 않은 전체 실험을 대신 판정하지 않는다.
연구진은 이 분화 경로를 더 진행해 인간 줄기세포에서 후뇌 rhombomere 5/6에 해당하는 운동뉴런을 만드는 결과도 제시한다. Rhombomere는 발생 과정의 후뇌를 구분하는 분절 이름이다. Figure 2e의 r1·r2·… 표기와 HNF1B·MAFB·HOXA3 같은 표지는 어느 위치의 정체성을 목표로 하는지 연결한다.[1][3]
그 의미를 로봇 부품 생산에 빗대면, “모터와 비슷한 부품”을 얻는 것에서 한 단계 더 나아가 어떤 위치에서 어떤 역할을 맡는 부품인지 지정하려는 것이다. 신경세포를 만들었다는 결과에서도 형태, 분자 표지, 전기생리, 연결 대상과 기능은 서로 다른 특성이다. 원하는 영역의 전구세포를 안정적으로 확보하면 그 다음 특성을 시험할 출발점을 더 명확하게 만들 수 있다.
#7. 연구실의 실험 설계에서 달라지는 점
이 결과가 후속 연구에서 유지된다면 줄기세포 분화의 문제를 마지막 단계만으로 설명하기 어려워진다. 목표 뉴런이 잘 만들어지지 않을 때 최종 성숙 조건만 바꾸는 대신, 훨씬 이른 시점에 어떤 전구세포를 만들었는지 확인해야 한다. aNE 경로에 들어간 세포와 pNE 경로에 들어간 세포가 같은 후속 신호에 다르게 반응한다면, 초기 분기 선택은 최종 수율의 중요한 원인이 될 수 있다.
오가노이드(organoid) 비교에서도 같은 관점이 유용하다. 모양이 비슷한 배양체라도 어떤 출발 경로와 세포 조합에서 만들어졌는지에 따라 담고 있는 영역 정체성이 달라질 수 있다. 후속 실험에서 원하는 것은 이름표가 같은 구조물 두 개보다, 실제로 비교 가능한 발생 단계와 구성이다. 이 문단은 논문의 임상 결과가 아니라, 두 경로 모델을 실험 설계에 적용할 때 생기는 해석이다.
데이터를 공개했다는 점은 이런 후속 비교의 출발점을 제공한다. 논문은 OmniATAC, bulk RNA, 단일세포 RNA 자료를 각각 GEO에 연결하고, 분석 코드도 공개 저장소로 안내한다. 공개 파일은 다른 연구자가 분류 기준과 정규화 선택을 살펴볼 기회를 준다. 다만 동일 파일을 다시 분석하는 계산 재현과 새로운 배양에서 같은 현상을 얻는 생물학적 재현은 구분해서 기록해야 한다.[1][4]
실험이 실패했을 때의 기록도 중요하다. 특정 집단이 다른 운명 표지를 거의 만들지 않는 결과는 단순한 불량 시료 목록이 아니라, 모델의 선택지 제한을 시험하는 자료가 될 수 있다. 출발 집단, 적용 신호, 측정 시점, 양성 기준이 연결돼 있어야 성공 사례와 실패 사례를 같은 질문 아래 비교할 수 있다.
#8. 다음 검증은 어디를 겨냥해야 하나
첫째는 범위다. 같은 분기와 운명 제한이 여러 인간 줄기세포주와 독립 실험실에서 얼마나 유지되는지 확인해야 한다. 한 세포주에서 높은 표지 양성률을 얻는 일과, 다양한 유전적 배경에서 일관된 생산 경로를 갖는 일은 산업적 활용에서도 다른 단계다.
둘째는 시간이다. 어느 시점에 운명이 제한되고, 그 전후에 신호를 바꾸면 어느 정도까지 방향을 바꿀 수 있는지 더 정밀하게 그릴 수 있다. 단순한 “가능·불가능” 표보다, 시간에 따른 반응 창을 알면 후속 분화 절차와 비교 실험을 설계하기 쉬워진다. 이 방향은 이 글의 후속 질문이며 논문이 모든 조건을 이미 탐색했다는 의미는 아니다.
셋째는 기능이다. 특정 영역 표지를 가진 뉴런이 만들어졌다면 이후 연결과 전기적 활동, 장기 안정성, 연구 목적에 맞는 반응을 확인할 차례다. 이번 논문을 특정 질환 치료의 성공으로 옮겨 쓰기보다, 이전에 얻기 어려웠던 세포 정체성을 연구할 출발점으로 읽는 편이 타당하다.
마지막으로 해석과 이해관계를 함께 남겨야 한다. 논문은 관련 신경 분화 기술에 관한 Stanford의 특허 출원을 명시한다. 이것은 결과를 자동으로 무효화하는 정보가 아니라, 공개된 분화 기술의 활용과 검증을 읽을 때 고려할 배경이다. 저자들이 제안한 장기간의 진화적 보존 역시 비교 자료에 근거한 확장 해석으로 다뤄야 한다.[1]
이 연구를 읽고 남길 질문은 분명하다. 세포가 지금 어디에 있고 무엇을 발현하는가를 넘어, 같은 조건을 주어도 왜 서로 다른 미래로 이어지는가? 두 신경외배엽 모델의 가치는 그 질문을 세포 추적과 배양 비교로 시험할 수 있게 만든 데 있다.
#9. 출처
[1] Jokhai, R. T., Dundes, C. E. 외. Two parallel neural ectoderm progenitors contribute to the developing brain. Nature Neuroscience, 2026-09-18. 초록·확장 자료·데이터 안내.
[2] 동일 논문 Figure 1 및 공개 캡션. 배아 위치·신호 조건·단일세포 발현과 정규화 정의.
[3] 동일 논문 Figure 2 및 공개 캡션. 계통 추적·분화·공동 배양, 대표 이미지의 양성률 및 반복 수.
[4] Loh Laboratory 공식 분석 저장소. ATAC-seq, RNA-seq, scRNA-seq 분석 파일.