먼저 쉬운 답부터. 질병과 함께 자주 발견되는 DNA 차이를 찾았다고 해서, 그 차이가 어느 유전자를 어떻게 바꾸는지 곧바로 알 수는 없다. MCCv는 같은 세포 집단 안의 두 대립유전자에서 DNA 접촉 구조를 나눠 읽어, 작은 서열 차이와 먼 유전자 조절의 연결을 좁히는 측정·분석 플랫폼이다. 단순히 가장 가까운 유전자를 범인으로 지목하는 방법이 아니다.[1]
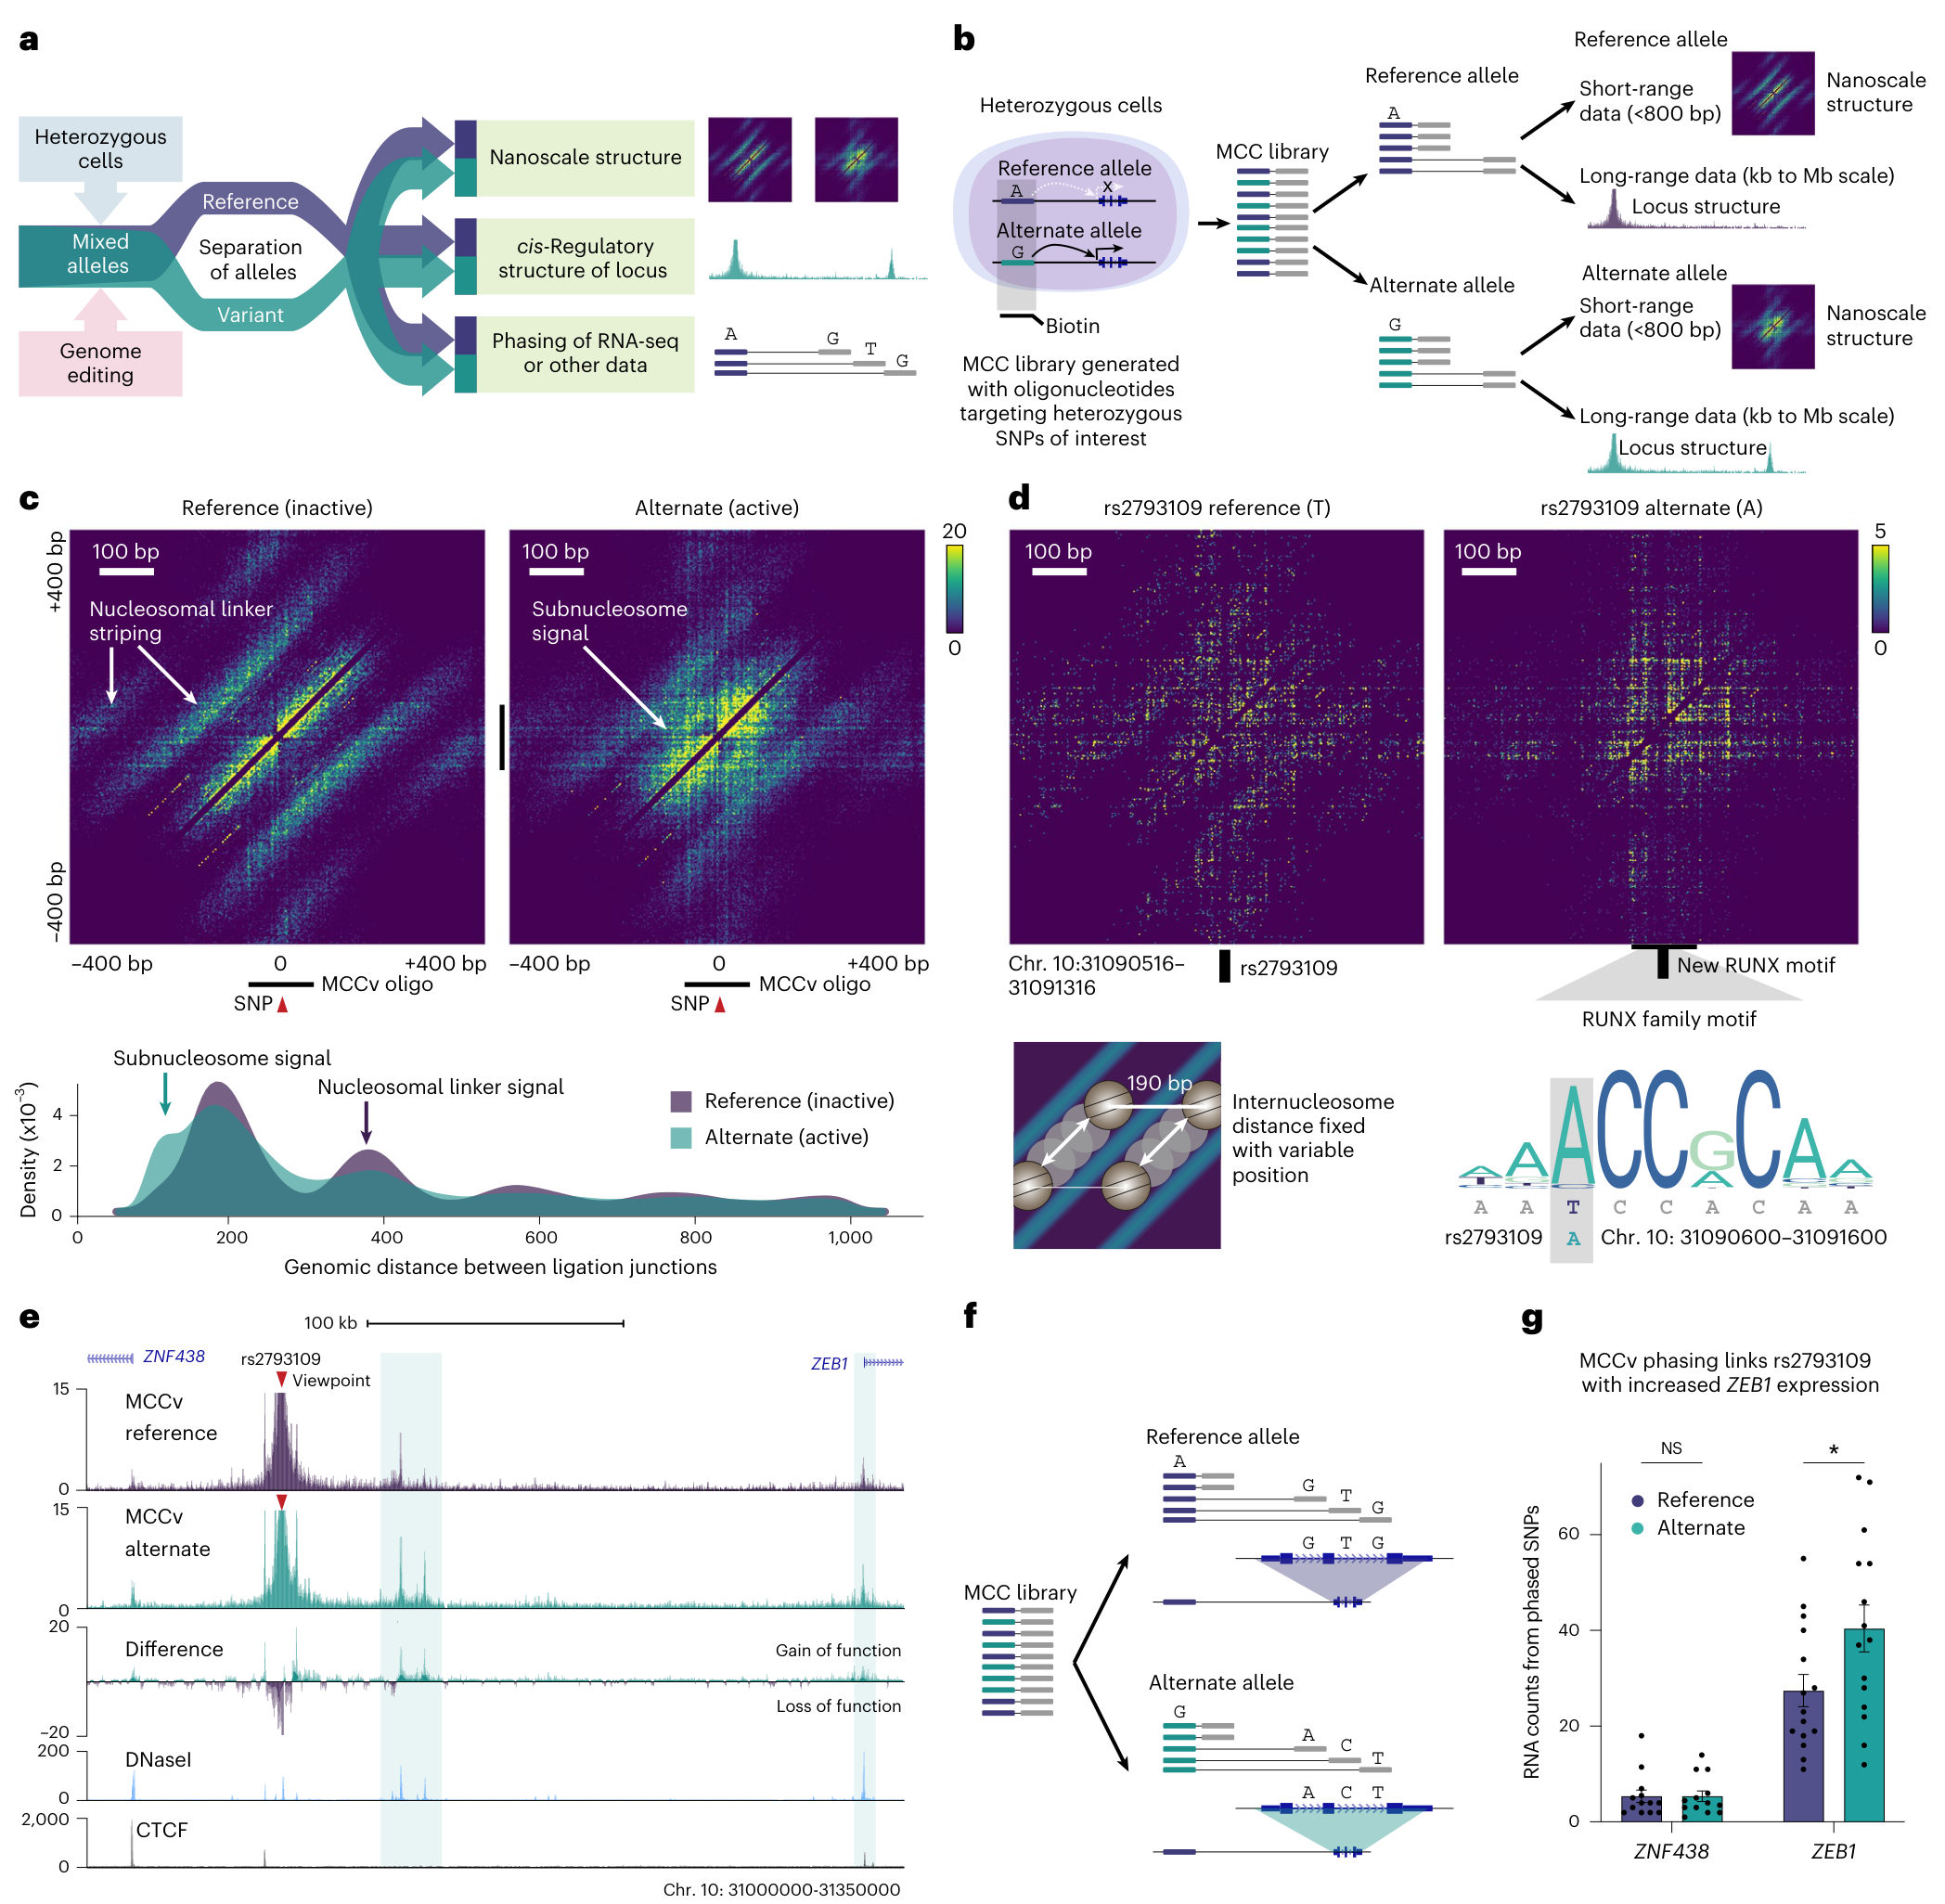
#원본 Figure 1 읽기: 작은 구조와 먼 연결을 함께 읽는다
a·b는 같은 자리의 두 서열을 구별해 짧은 접촉 지도와 긴 거리의 조절 연결을 얻는 흐름이다. c·d의 열지도는 세포를 촬영한 현미경 사진이 아니라, 염기서열 좌표 사이의 접촉 자료를 정리한 지도다. e는 멀리 떨어진 위치와의 접촉, f는 다른 변이의 위상(phasing)을 연결하는 방법, g는 그 위상 정보를 이용한 유전자 발현 비교다. 이 예에서는 ZEB1과 ZNF438을 구분한다. 접촉이 있다는 사실과 발현이 변한다는 사실을 따로 확인한 이유가 보인다.[1]
처음 읽는 분 변이·증강자·대립유전자를 처음 본다면 그림으로 보기
유전적 변이(variant)는 같은 위치의 DNA 글자가 사람이나 염색체 사본에 따라 다른 경우다. 대립유전자(allele)는 해당 자리의 서로 다른 형태를 말한다. 두 사본이 다르면 이형접합(heterozygous)이라고 부른다. 연구에서는 이를 구별할 수 있어야 같은 세포 집단에서 한쪽과 다른 쪽의 접촉을 비교할 수 있다.
단백질을 만드는 서열 밖에도 유전자 작동을 조절하는 구간이 있다. 증강자(enhancer)는 이런 조절 요소이며, 프로모터(promoter)는 전사 시작을 제어하는 부위다. 길게 펼친 DNA에서는 멀어 보여도 접힌 핵 안에서는 가까워질 수 있다. 그렇다고 가까이 있다는 것만으로 특정 순간에 반드시 발현을 높인다는 뜻은 아니다. 접촉·발현·기능을 이어서 확인해야 한다.[1]
GWAS는 어떤 변이가 질병과 통계적으로 함께 나타나는지 찾는다. 함께 유전되는 근처 변이들이 묶여 보일 수 있어, 하나의 연관 신호가 곧 하나의 원인 변이·유전자라는 등식은 성립하지 않는다. MCCv가 해결하려는 것은 이 연관성과 기능 사이의 간격이다.
#1. 가까운 유전자만 고르면 왜 틀릴 수 있나
비암호화 영역의 변이는 단백질 서열을 직접 바꾸지 않더라도 전사인자의 결합 자리나 조절 구조를 바꿀 수 있다. 그 효과는 멀리 있는 유전자에 나타날 수 있고, 어떤 세포가 활성화됐는지에 따라 다를 수 있다. 동일한 변이를 혈액의 한 세포에서 관찰한 결과를 모든 조직의 기능으로 일반화할 수 없는 이유다.[1]
염색체 구조 포획(3C 계열) 방법은 DNA의 어떤 부분들이 접촉하는지 서열로 읽는다. 전통적인 제한효소 기반 방법은 절단 위치의 제약을 받는다. MCCv는 Micro Capture-C를 활용해 변이 주변의 촘촘한 자료를 만들고, 일반적인 분석에서 제외되던 800 bp 미만의 짧은 접촉을 국소 구조 정보로 이용한다. 동시에 긴 거리의 접촉도 읽으므로 국소 변화와 후보 표적을 연결할 수 있다.[1][2]
여기서 염기쌍 해상도는 개별 DNA 위치를 세밀하게 구별하는 분석을 뜻한다. 세포 한 개의 모든 구조를 한 번에 완전히 복원했다는 뜻은 아니다. single-allele와 single-cell은 같은 말이 아니다. 같은 세포 집단에서 나온 자료를 대립유전자별로 분리하는 실험이라는 점을 이해해야 열지도를 과장하지 않을 수 있다.
#2. MCCv가 결합하는 세 종류의 정보
첫째, 변이 근처의 짧은 접촉으로 뉴클레오솜과 전사인자 결합 주변의 구조 차이를 분석한다. 둘째, 같은 관측 지점에서 멀리 떨어진 증강자와 프로모터에 대한 접촉을 찾는다. 셋째, 주변의 다른 이형접합 변이들이 어느 사본과 함께 있는지 위상을 정해 RNA 자료와 연결한다. 이 조합은 “서열이 다르다 → 접촉이 다르다 → 발현도 다른가”를 단계별로 질문하게 만든다.[1]
예를 들어 Figure 1의 rs2793109에서는 두 후보 프로모터와의 접촉을 살핀 뒤, 위상이 연결된 RNA 읽기로 ZEB1 발현의 차이를 확인한다. 두 유전자가 근처에 있다는 이유만으로 동일한 기능 변화가 있다고 단정하지 않는다. 논문이 보여준 개별 사례는 플랫폼의 설명력이고, 아직 검사하지 않은 모든 변이에 대한 보증은 아니다.[1]
접촉 읽기 60 대 40은 질병 위험 60%인가? 기호·연산·계산 과정 펼치기
같은 집단에서 두 사본을 비교하면 실험 환경 차이를 줄일 수 있지만 모든 편향이 자동으로 없어지는 것은 아니다. 서열이 다르기 때문에 읽기가 기준 게놈에 붙는 정도가 달라질 수 있다. 논문은 매핑 편향을 줄이는 대립유전자별 분석 절차와 반복 측정을 사용한다. 따라서 “해상도가 높다”뿐 아니라 어떻게 비교 집단과 기술적 잡음을 맞췄는지가 중요하다.
#3. 405개와 241개, 251개는 서로 다른 분모다
첨부 선정안은 405개 조사 대상을 ‘regulatory variants’라고 요약했다. 원논문의 초록과 결과는 405개 cis-regulatory elements를 조사하고, 대립유전자별 분석에서는 세 기증자의 241개 이형접합 위치에서 위상별 자료를 얻었다고 구분한다. 또한 접촉 정보를 이용해 251개 후보 원인 유전자를 제안한다. 이를 405개 변이의 인과관계를 모두 증명한 것으로 소개하지 않는다.[1]
| 숫자 | 실제로 센 것 | 바꾸어 말하면 안 되는 것 |
|---|---|---|
| 405 | 면역 질환과 연결된 조사 대상 조절 요소 | 405개의 치료 표적이 임상적으로 확정됨 |
| 241·3명 | 세 기증자에서 위상별 분석이 가능한 이형접합 위치 | 405개 모두 모든 사람에서 똑같이 비교됨 |
| 54.6% | 이형접합 질병 연관 변이 중 유의한 접촉 변화가 하나 이상인 비율 | 환자의 54.6%가 발병함 |
| 251 | 접촉 자료를 근거로 제안한 후보 원인 유전자 | 모두 편집·발현·질병 기능 검증을 마침 |
연구진도 증강자–프로모터의 접촉이 항상 전사 변화를 만들지는 않는다고 설명한다. 접촉 자료는 가능성이 낮은 후보를 줄이고, 다음 검증을 우선순위화하는 데 강하다. 특정 접촉 변화와 연결된 유전자에서 대립유전자별 발현 불균형이 더 풍부하다는 결과는 이를 지지하지만, 최종적으로는 변이와 유전자 수준의 기능 검증이 필요하다.[1]
원인 후보와 확인된 원인을 같은 명사로 부르면 신약 개발의 거리가 짧아 보이게 된다. 이 논문은 그 거리를 한꺼번에 없앤 것이 아니라 더 직접적인 측정으로 좁혔다. 특히 CD4⁺ T 세포와 선택한 면역 질환 위치에서 얻은 결과이므로 다른 세포 유형과 질환에서는 표적 선택부터 다시 검토해야 한다.
#4. SESN3 사례: 새 결합 자리가 생겨 연결을 막는다
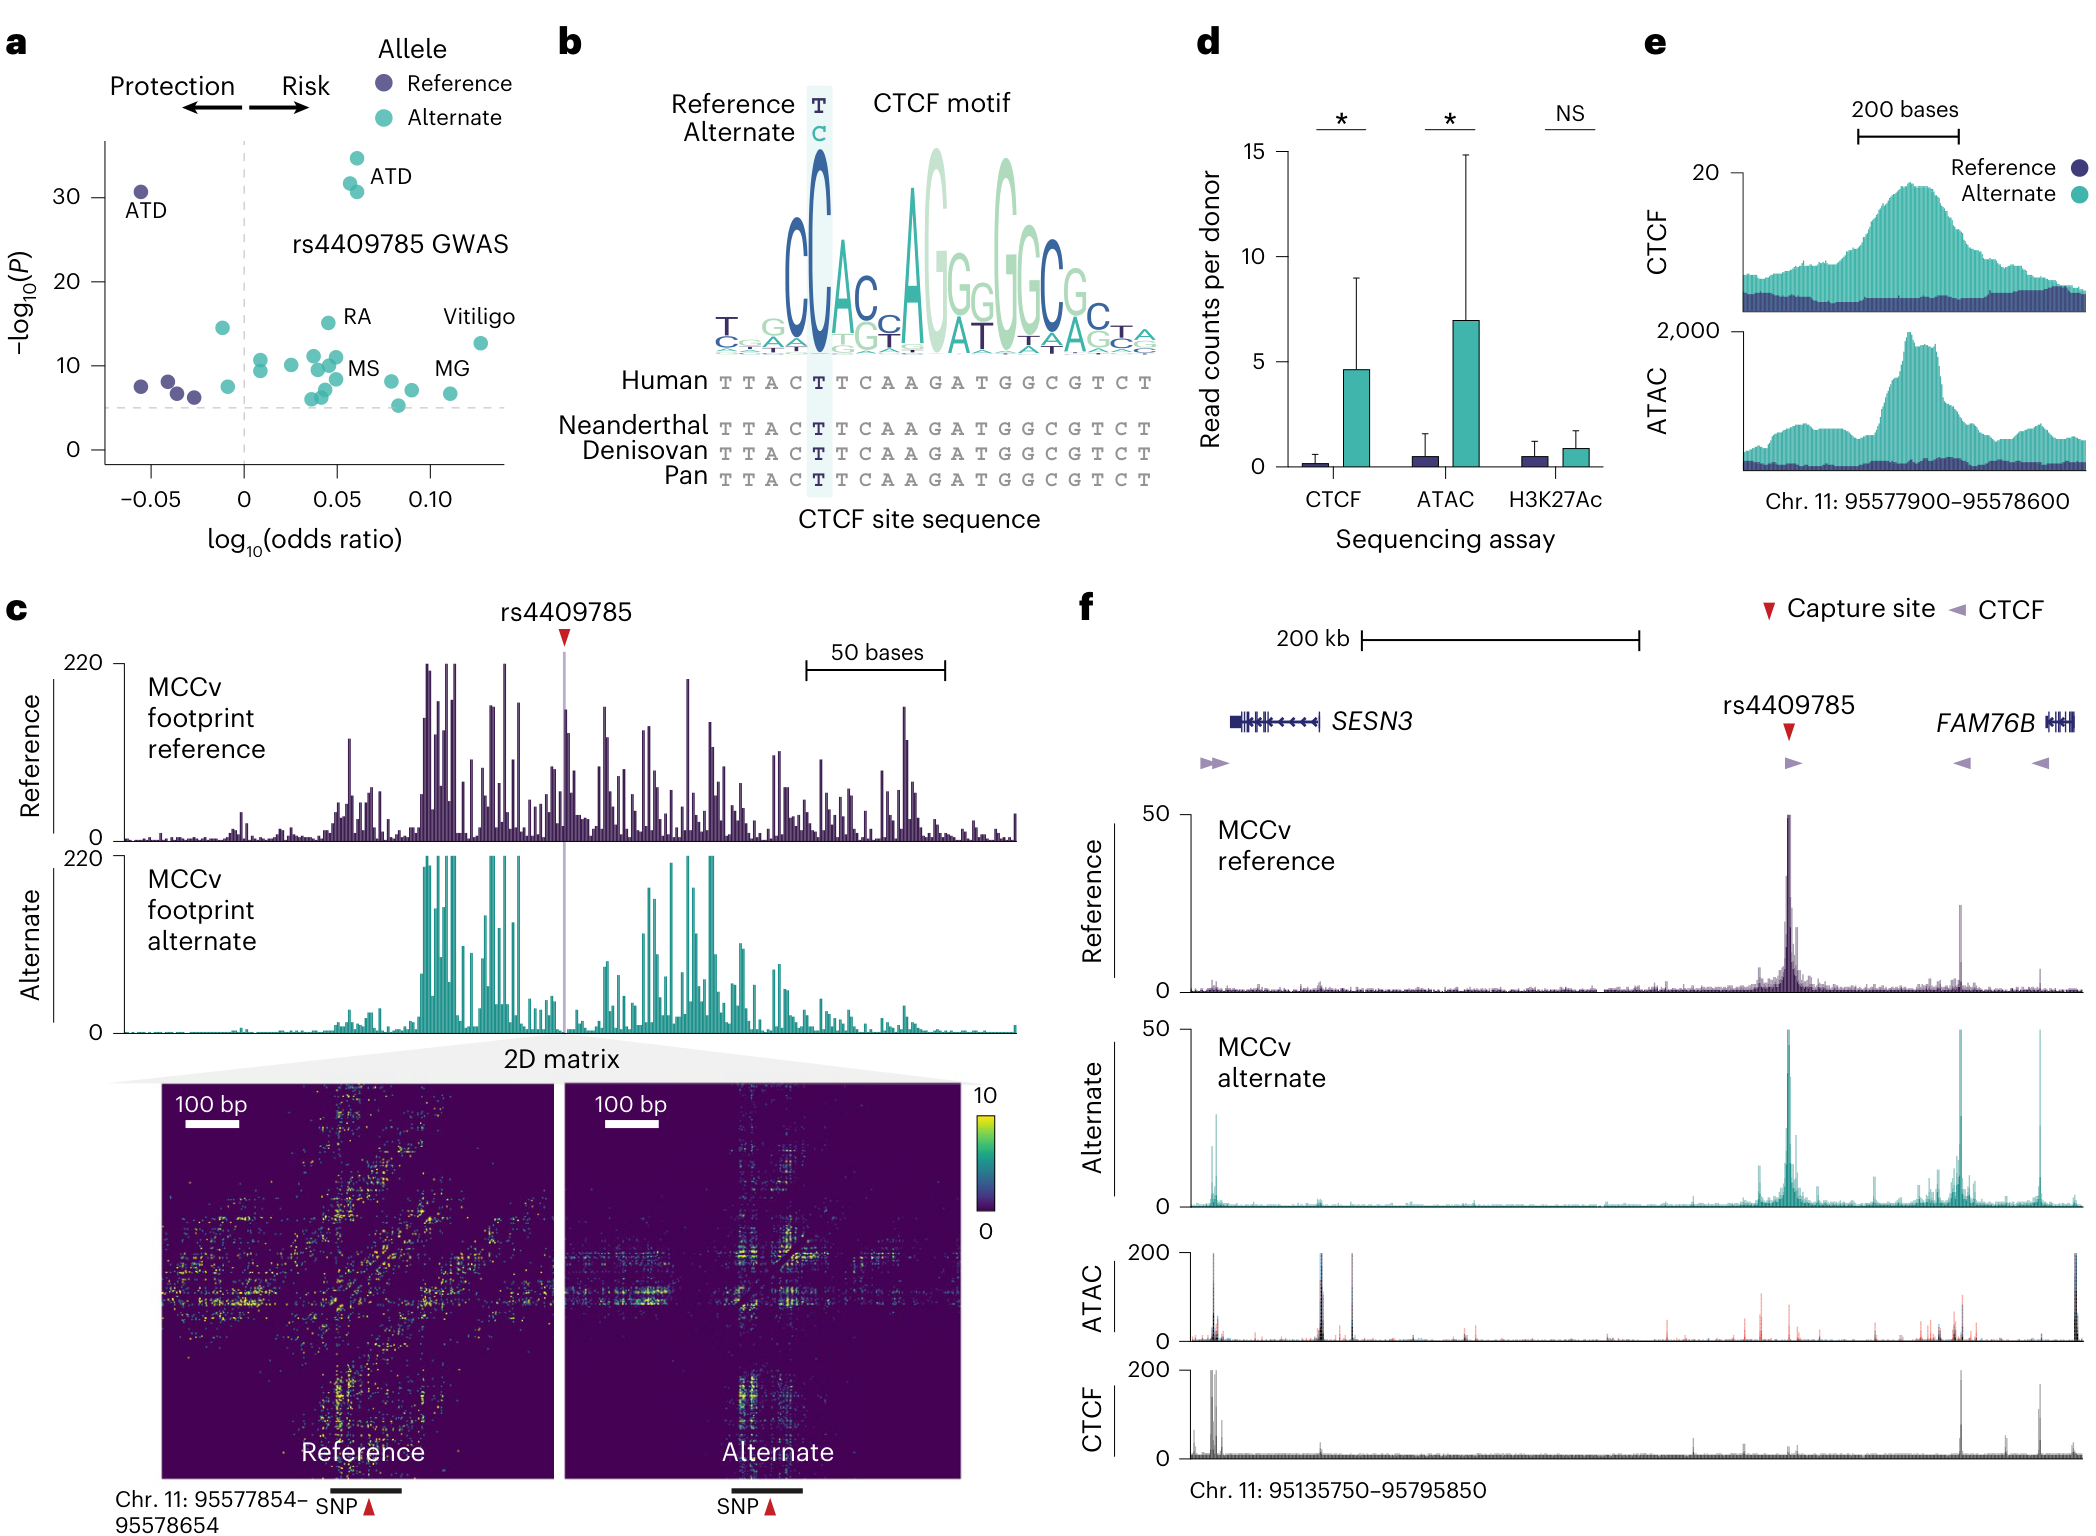
#원본 Figure 4 읽기: 변이가 만드는 것은 새 단백질이 아니다
이 그림은 rs4409785의 위험 대립유전자가 CTCF 결합 모티프를 새로 만드는 사례를 다룬다. a는 여러 질병과의 연관, b는 서열 모티프, c는 해당 위치의 국소 접촉 구조, d·e는 CTCF 결합과 염색질 접근성, f는 더 긴 거리의 접촉을 보여준다. 위험 대립유전자의 접촉 봉우리가 크다고 모든 유전자 발현이 증가한다는 뜻은 아니다. 새 구조적 경계가 다른 중요한 연결을 줄일 수도 있다.[1]
논문은 이 변이에서 생긴 neo-CTCF 자리와 하류 CTCF 위치의 강한 접촉, 그리고 SESN3 프로모터와 T 세포 증강자 사이의 접촉 감소를 연결한다. CTCF는 단순한 발현 켜기 스위치가 아니라 염색질의 구조적 연결과 경계 형성에 관여하는 단백질이다. 새 결합이 생기는 gain-of-function이 다른 유전자의 발현에는 감소 방향으로 이어질 수 있다는 점이 이 사례의 핵심이다.[1]
추가 게놈 편집 실험은 대립유전자를 구별하는 변이 자체는 남겨 두면서 CTCF 모티프의 기능을 바꾸고, 대조 편집과 비교한다. 원논문 Figure 5는 두 대립유전자와 여러 편집 결과를 분리해 접촉 구조가 달라지는지 확인한다. 단순 상관보다 한 단계 강한 기전 증거지만, 그 개별 결과를 405개 전체의 실험으로 확대해서는 안 된다.[1]
#5. 접촉에서 세포 기능과 동물 질환으로
SESN3는 영양 감지와 mTOR 신호의 연결에서 연구됐다. 저자들은 T 세포 조건에서 유리 트립토판 수준과 SESN3–GATOR2 상호작용을 살폈고, 영양 결핍 상황의 mTOR 조절과 연결했다. 여기서 단백질 상호작용과 조건별 신호 변화는 기전을 좁히는 자료다. 모든 조직에서 항상 동일하게 작동하거나 트립토판을 먹으면 자가면역 질환을 치료한다는 결과가 아니다.[1]
동물 검증에서는 조혈 줄기·전구세포의 Sesn3를 교란한 뒤 자가면역성 뇌척수염(EAE) 모델에서 질병 진행이 빨라지는 결과를 관찰했다. 사람의 비암호화 위험 변이, 특정 조절 모티프의 편집, 유전자 결손 마우스는 각각 다른 수준의 실험이다. 서로 방향이 맞는다는 것은 강점이지만, 같은 처치를 같은 종에서 반복한 것과는 다르다. EAE도 사람에게 치료 효과를 입증하는 임상시험은 아니다.[1]
이 연결을 읽을 때는 연관 → 구조 → 발현 → 분자 기능 → 질환 표현형 사이에서 어느 고리가 직접 측정됐고 어느 고리가 해석인지 질문하면 된다. 결과가 긴 경로를 잇는다는 사실과 모든 단계가 완전하게 확정됐다는 주장은 다르다. 이 프레임은 다른 유전체 연구를 읽을 때도 사용할 수 있다.
#6. 재현 자료와 이해관계도 기능의 일부다
논문은 GEO의 시퀀싱 자료, Zenodo의 처리된 국소 열지도, Source Data를 안내한다. 코드는 한 가지 라이선스로 전부 무제한 공개된 것이 아니다. MCC 파이프라인·peak caller·variant-to-function 분석은 Oxford University Innovation을 통한 학술 사용 조건을 안내하고, SNP 우선순위 코드와 basepairC는 별도 GitHub 경로를 제공한다. 사용 목적에 맞는 조건을 확인해야 하며 이 글은 소프트웨어 이용 권한을 새로 부여하지 않는다.[1]
첨부안 보완. 선정안에서는 상업적 이해관계를 미확인으로 남겼다. 실제 원문에는 일부 저자의 Nucleome Therapeutics 공동창업·자문·이사직, MCC 방법 특허와 회사 라이선스가 공개돼 있다. BEAM Therapeutics와의 기술 라이선스·주식, Dark Blue Therapeutics 자문, Illumina 고용 관련 설명도 있다. 이런 공개를 빼고 “이해관계 없음”으로 요약하지 않는다. 나머지 저자들은 이해관계가 없다고 선언한다.[1]
이해관계는 자료를 자동으로 무효화하는 기준이 아니라 독립 재현과 접근 조건을 해석하는 정보다. 출판사에 자료 링크가 있다는 사실, 일부 코드에 학술 조건이 있다는 사실, 외부 연구실이 실제로 전체 분석을 반복했다는 사실을 구분해야 한다. 이번 블로그 작업에서는 원문과 관련 보충 설명을 읽었지만 시퀀싱 원자료를 재정렬하거나 모델을 재적합하지 않았다.
#7. 다음에 확인할 트리거
후속 연구는 다른 기증자·활성 상태·세포 유형에서 어떤 변이와 표적 연결이 유지되는지 보여야 한다. 대립유전자 비교가 가능한 위치와 불가능한 위치, 저빈도 변이와 낮은 읽기 깊이도 다르게 다뤄야 한다. 동일한 분석이 잘 작동하는 조건뿐 아니라 실패하거나 판단을 보류한 위치를 공개하면 실제 적용 범위가 더 명확해진다.
다음 단계에서는 우선순위가 높은 후보의 편집·발현·기능 검증을 늘리고, 표적화가 의도한 세포 기능을 바꾸면서 다른 조직에는 어떤 영향을 주는지 살펴야 한다. 임상 치료 효과와 안전성은 그 뒤의 별도 문제다. 이 연구의 후보 점수 97은 제공된 편집 판단이며 의학적 유용성을 확률로 보정한 숫자가 아니다.
MCCv의 가치는 “질병 관련 DNA 글자의 정답을 자동으로 출력한다”는 데 있지 않다. 과거에 버리던 짧은 접촉과 긴 거리 연결을 대립유전자별로 함께 읽어, 무엇을 다음에 검증해야 할지 더 좁고 직접적인 질문을 만들었다는 데 있다. 높은 해상도를 높은 확신과 혼동하지 않을 때 이 플랫폼의 실제 기여가 드러난다.
#출처·확인 범위
[1] Hamley et al., Single-allele nanoscale mapping of regulatory variants. Nature Genetics, 2026-10-02 Version of Record, DOI 10.1038/s41588-026-02776-8. Results·Discussion·Data/Code availability·Competing interests 및 Figure 1·4 확인: 2026-10-05. [2] 동일 논문 Supplementary Information. 표적 선정·위상 및 분석 설명, 실험 규모 확장의 조건을 포함한 보충자료.첨부안의 후보 선정과 질문을 바탕으로 작성했으며, 405개 대상의 정의와 미확인 이해관계는 원문 확인 결과를 별도로 명시했다. 사람의 변이를 임상적으로 재분류하거나 약물·식이 치료를 권하지 않는다. 원자료 전체 재분석이나 실험 재현은 수행하지 않았다. 두 원도판은 전체 패널·축·주석·색상을 유지하고 출처와 CC BY 4.0을 표시한다. 이 글에는 광고를 표시하지 않는다.